肠道微生物群在维持人类健康中扮演着至关重要的角色,其中普拉梭菌(Faecalibacterium prausnitzii)作为丁酸生成菌与肠道稳态的关系密切。炎症性肠病(inflammatory bowel disease,IBD),包括克罗恩病(Crohn′s disease,CD)和溃疡性结肠炎(ulcerative colitis,UC),是一组以肠道免疫系统过度激活和微生物群失调为特征的慢性炎性疾病。近年研究表明,普拉梭菌在IBD患者肠道中的丰度显著降低,其抗炎特性使其成为潜在的诊断标志物和治疗靶点。本文旨在系统综述普拉梭菌的微生物学特性、与宿主的交互模式、丰度变化规律、免疫调节机制、生态学交互作用、生物标志物潜力、干预调控途径(特别是肠道菌群移植的影响)以及当前研究的局限性,并展望其在IBD诊治中的未来应用前景。通过整合最新研究成果,力求为普拉梭菌在IBD中的作用提供全面而深入的解读。
一、微生物特性
普拉梭菌是一种革兰氏阳性、杆状、非运动、无孢子的严格厌氧菌,属于厚壁菌门(Firmicutes)、梭菌纲(Clostridia)、瘤胃球菌科(Ruminococcaceae),并被分类于梭菌Ⅳ群(Clostridium leptum group)。普拉梭菌对氧气极度敏感,仅能在氧气浓度低于1%的环境中存活。然而,普拉梭菌通过独特胞外电子转移机制,利用黄素和硫醇等化合物将电子转移至氧气,从而在肠道黏膜附近等低氧环境中维持活性。普拉梭菌最佳生长的pH范围为5.7~6.7,与结肠的生理环境高度契合,但其对胆盐极为敏感,0.5%(wt/vol)的胆盐浓度即可显著抑制其生长。这些特性决定了普拉梭菌在肠道生态位中的分布偏好集中于低氧的结肠黏液层(图1)。
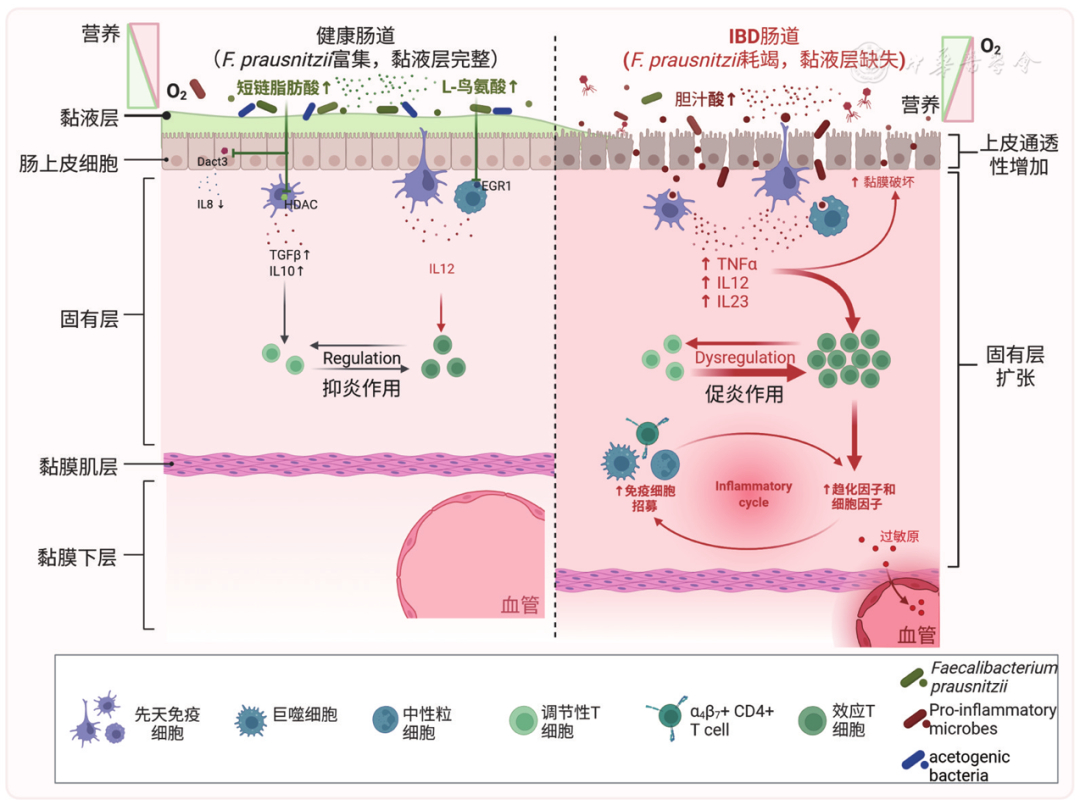
图1 普拉梭菌耗竭与炎症性肠病发生发展的机制示意图
注:F.prausnitzii为普拉梭菌;HDAC为组蛋白脱乙酰化酶;EGR1为早期生长反应1基因;TGF-β为转化生长因子-β;IL为白细胞介素;IBD为炎症性肠病;TNF-α为抗肿瘤坏死因子-α
普拉梭菌能够代谢多种底物,包括简单碳水化合物(如葡萄糖、果糖、纤维二糖、麦芽糖)和复杂多糖(如菊粉、果胶),主要代谢产物包括丁酸、甲酸和少量D-乳酸,其中丁酸是结肠上皮细胞重要能量来源,具有显著抗炎作用。此外,普拉梭菌还生成其他代谢物,如L-鸟氨酸、水杨酸和莽草酸,这些化合物可能通过抗炎或代谢调控途径进一步促进宿主健康。基因组分析揭示,普拉梭菌存在两个主要谱系群(谱系群Ⅰ和Ⅱ),其16S rRNA基因序列相似性约为97%,但平均核苷酸同一性(ANI)低于94%,提示二者可能代表不同基因组种。不同谱系群之间在代谢谱、免疫调节能力等功能上存在差异,揭示其在临床应用中的多样性和潜力。基于84株普拉梭菌的泛基因组分析揭示普拉梭菌的核心基因组仅占全部8 420个同源簇的4.5%,而附属基因高达95.5%,测试的所有株均具有完整的脂肪酸代谢途径,能从乙酰-CoA合成短链脂肪酸,但酶产生和免疫调节属性株间变异大,如附属基因编码的 MAM基因高表达于谱系群Ⅱ的代表株A2-165,可能增强特定株的抗炎作用。研究同时检测出8种类型的毒力因子和12种类型的致病基因,提示如作为下一代益生菌应用于临床,需优先选取A2-165、CNCM I 4541等高抗炎低风险菌株。
在健康成人肠道中,普拉梭菌的丰度通常占微生物群的5%~15%,因年龄、饮食习惯和地理区域而异。相较于非西方国家,西方人群的丰度普遍较低,而在新生儿和儿童中,其丰度显著低于成人,并随年龄增长逐渐增加。这些特性反映了普拉梭菌在肠道生态系统中的重要性及其对环境因素的敏感性。
二、普拉梭菌丰度变化与IBD
普拉梭菌在IBD患者肠道中的丰度显著降低。荟萃分析显示,IBD患者粪便样本中普拉梭菌的细菌计数为(6.7888±1.8875)log10 CFU/g,显著低于健康对照组的(7.5791±1.5812)log10 CFU/g(P<0.0001,95%CI:-1.07~-0.80)。在CD患者中,丰度减少尤为明显(SMD:-1.13),且与疾病活动和复发密切相关。相比之下,UC患者的减少幅度稍轻(SMD:-0.78),反映了疾病亚型差异。
黏膜相关样本的分析进一步揭示,IBD患者谱系型丰富度显著降低,尤其在回肠受累的CD患者中,谱系群Ⅱ减少更为显著。近期蛋白质组学研究证实,IBD患者普拉梭菌的蛋白表达水平低于健康个体,并与初级和次级胆汁酸水平升高相关,提示胆汁酸代谢失衡是其丰度下降的潜在驱动因素。此外,在艰难梭状芽孢杆菌感染患者中,普拉梭菌特异性噬菌体水平升高,可能进一步抑制其定植。其他环境因素,如炎症导致肠道氧浓度升高和营养可及性下降,也可能削弱普拉梭菌的生态竞争力。这些发现表明,普拉梭菌丰度的降低不仅是IBD的标志,还可能通过破坏抗炎代谢网络加剧疾病进程。
三、与宿主的互作模式
普拉梭菌通过多层次的直接和间接机制与宿主交互,共同维持肠道稳态和免疫平衡。在IBD患者中,普拉梭菌丰度显著降低,导致其抗炎代谢网络破坏加剧疾病进程。
首先,普拉梭菌通过直接物理接触影响宿主。其表面分子能够与肠黏膜上皮细胞(intestinal epifhelial cell,IEC)的特定受体结合,增强紧密连接蛋白(如ZO-1、occludin)的表达,强化肠屏障功能。而在IBD患者中,这一保护作用因普拉梭菌耗竭而受损,导致上皮屏障破坏并加剧黏膜通透性。体外实验进一步证实,普拉梭菌的培养上清液可有效消除IL-1β诱导的核因子κB(NF-κB)活性,提示其分泌物在屏障保护中具有关键作用。此外,普拉梭菌与树突状细胞和T细胞的直接接触可上调抗炎细胞因子白细胞介素(interleukin,IL)-10的表达,诱导CD4+CD8α+调节性T细胞(Tregs)的增殖,抑制炎症反应,提高肠道免疫耐受,在IBD患者中,固有层和外周血中的DP8α Tregs对普拉梭菌的反应显著减弱,提示其免疫调节功能的受损可能是IBD病理的重要特征。体外研究显示,其可显著降低肿瘤坏死因子(tumor necrosis factor,TNF)-α刺激的HT-29细胞中IL-8的生成,提示其在抑制肠黏膜局部炎症中的直接作用。
其次,普拉梭菌通过代谢产物调控宿主免疫和代谢环境。其主要代谢产物丁酸为肠上皮细胞提供约73%~75%的耗氧能量,通过线粒体β-氧化维持肠道低氧环境。丁酸在宿主中发挥多重抗炎作用,包括抑制NF-κB和组蛋白脱乙酰化酶(HDAC),上调抗炎因子(如IL-10、TGFβ-1)并下调促炎因子(如IL-8)。体外实验显示,丁酸可显著降低IEC中IL-8生成,同时上调TGFβ-1表达,促进抗炎性Tregs的分化。此外,丁酸通过上调Dact3表达,负调控Wnt/JNK信号通路,进一步抑制TNF-α诱导的炎症反应。另一代谢产物L-鸟氨酸通过抑制EGR1-IL12RB1/TYK2/STAT3信号轴,减少Th17细胞活性,增强免疫调节,在CD患者中可提升乌司奴单克隆抗体的治疗敏感性。此外,普拉梭菌还生成其他代谢物,如水杨酸和莽草酸。水杨酸通过诱导白色脂肪细胞棕化或作为5-氨基水杨酸的前体,发挥抗炎和代谢调控作用。莽草酸作为芳香族化合物的合成前体,可间接支持抗炎途径。这些代谢产物的协同作用构成了普拉梭菌调节IBD发生发展的多维网络。
普拉梭菌在肠道生态系统中通过交叉喂养(cross-feeding)与其他微生物协同作用(图2)。乙酸交叉喂养是普拉梭菌生成丁酸的核心驱动机制。其通过丁酰辅酶A:乙酸辅酶A转移酶途径,利用B.thetaiotaomicron或Bifidobacterium等菌产生的乙酸(浓度20~70 mM),将胞内丁酰辅酶A转化为丁酸。体外实验显示,补充33~50 mM乙酸可显著刺激普拉梭菌的生长和丁酸产量,增强其抗炎潜力。这一机制体现了肠道微生物群的代谢分工,F.prausnitzii依赖其他菌的乙酸供应以高效生产丁酸。丁酸缺乏不仅削弱肠屏障保护功能,还加剧NF-κB介导的炎症反应。普拉梭菌难以直接代谢菊粉等复杂多糖,但其可代谢菊粉降解产生的果糖,通过磷酸烯醇式丙酮酸,碳水化合物磷酸转移酶系统高效摄取果糖,从而增加丁酸生成。在CD患者中,微生物群多样性下降,使这一代谢网络受到破坏,进一步限制了普拉梭菌的抗炎潜能。一项干预研究显示,健康志愿者连续16d摄入菊粉补充剂后,普拉梭菌和Bifidobacterium adolescentis丰度显著增加,伴随丁酸产量提升。此外,普拉梭菌还能利用其他微生物降解复杂多糖产生的中间产物。如Akkermansia muciniphila降解黏液生成的寡糖,或Bacteroides ovatus和Roseburia intestinalis降解β-甘露聚糖的产物,进一步扩展丁酸代谢底物范围。交叉喂养等代谢协同作用机制强化了普拉梭菌在宿主中的抗炎机制。
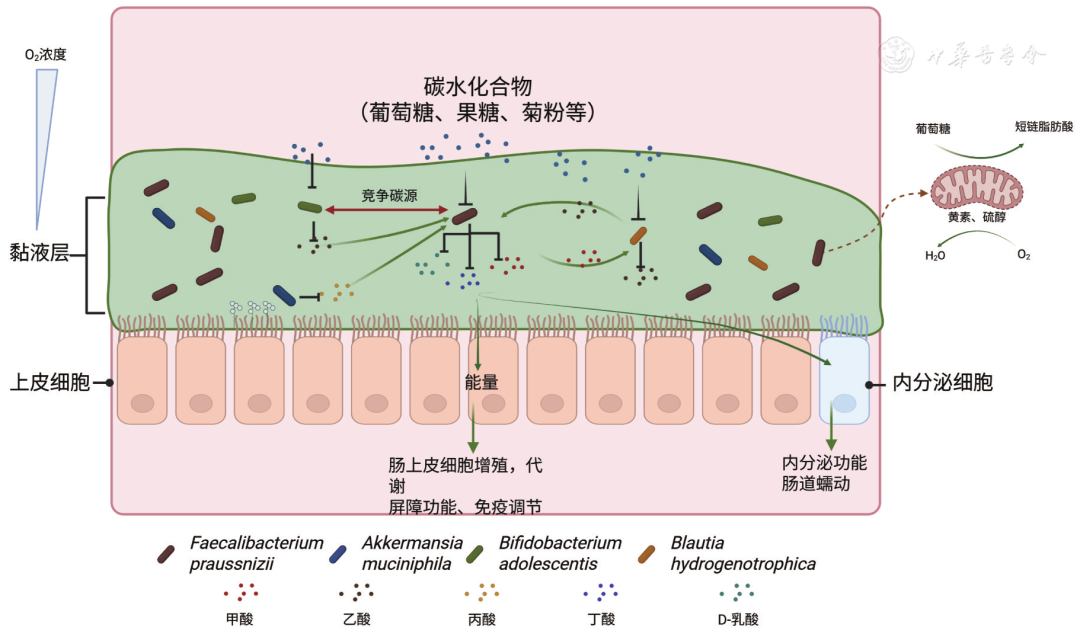
图2 普拉梭菌通过交叉喂养与其他微生物协同作用
四、生物标志物潜力
多项研究证实普拉梭菌的丰度可作为IBD诊断和疾病活动度监测的潜在生物标志物。F-E指数(普拉梭菌和Escherichia coli丰度的比值)能够有效区分活动期CD、UC和肠易激综合征,诊断性能较高(敏感性79%~80%,特异性98%~100%)。研究进一步显示,普拉梭菌丰度与粪钙卫蛋白(fecal calprotectin,FC)水平呈负相关,提示其可作为监测IBD炎症活动度的非侵入性指标,反映疾病缓解。然而,单独定量普拉梭菌在区分IBD亚型或预测疾病进程方面的能力仍有限,需结合其他微生物指标(如 Ruminococcus、Roseburia)以提升诊断准确性。此外,普拉梭菌的谱系型差异(尤其是谱系群II在CD中的特异性减少)进一步提示,基于谱系群的生物标志物开发可能为个性化诊断提供新方向。未来研究需结合多模态检测方法,确保普拉梭菌作为生物标志物在临床实践中的稳定性和特异性。
五、干预普拉梭菌丰度的途径
调控普拉梭菌丰度有望缓解IBD的重要策略,通过促进其产生丁酸盐等代谢物,抑制炎症、修复肠道屏障并改善微生物群平衡。当前干预途径包括饮食、益生元、益生菌、肠道菌群移植(fecal microbiota transplant,FMT)和药物干预。
1.饮食干预:饮食调控肠道微生物群,直接提升普拉梭菌丰度以缓解IBD炎症。地中海饮食可增加普拉梭菌水平,降低FC、减轻肠炎症状。低发酵性寡糖、二糖、单糖和多元醇饮食在儿童中提升普拉梭菌丰度并改善肠易激综合征症状,但成人IBD患者效果因个体差异而异,需验证长期疗效。间歇性禁食通过代谢重塑、抑制炎症、维持适宜pH和降低氧化应激,显著增加普拉梭菌丰度,从而增强其丁酸产生,缓解IBD炎症反应。
2.益生元干预:益生元通过肠道发酵选择性促进普拉梭菌生长,增强其丁酸产量以治疗IBD。菊粉发酵产生果糖和乙酸,刺激普拉梭菌增殖和丁酸生成,修复IBD肠道屏障,它还通过支持双歧杆菌和拟杆菌等菌群,形成交叉喂养网络稳定普拉梭菌生态位,聚葡萄糖、可溶性玉米纤维和棉子糖在随机对照试验中显著提升普拉梭菌水平,优化其抗炎作用。抗性淀粉补充在小鼠模型中增加普拉梭菌丰度和丁酸产量,尤其在初始丰度低者中,证实其作为IBD治疗机制。系统评价进一步确认,益生元通过纤维发酵优化普拉梭菌的生态位,是IBD等疾病的潜在治疗机制。
3.益生菌干预:益生菌通过代谢协同(如产生乙酸)促进普拉梭菌生长,直接增强其对IBD的抗炎益处。Lactobacillus plantarum PMO08干预2周显著提升普拉梭菌丰度,缓解IBD相关炎症。Enterococcus durans EP1和L. paracasei N1115同样通过乙酸供应增加普拉梭菌水平,支持其丁酸产生和肠道修复。联合益生菌与饮食或益生元可放大普拉梭菌的治疗效应,缓解IBD炎症。
4.FMT:FMT重塑微生物群,直接引入或恢复普拉梭菌丰度以治疗IBD。在IBD患者中,FMT增加普拉梭菌水平,与疾病缓解相关,但受供体组成和宿主免疫影响。小鼠模型显示,抗生素诱导的普拉梭菌减少可经FMT恢复,缓解炎症。其机制包括引入富含普拉梭菌和乙酸生成菌的供体,填补生态位。一项纳入UC患者的研究证实,FMT治疗后获益与移植后普拉梭菌等丁酸产生菌比例升高相关,直接改善黏膜炎症。此外,FMT可通过降低肠道氧化应激和炎症水平,为普拉梭菌生长创造有利条件。
5.药物干预:特定药物调控普拉梭菌丰度以辅助IBD治疗,但效应因药而异。阿莫西林和环丙沙星降低普拉梭菌水平,可能加重IBD炎症,而硝基呋喃妥因增加其丰度。在IBD术后的病例中,窦道或吻合口区域可能存在继发性细菌过度生长,从而持续引发慢性炎症。抗生素治疗通过减少总体菌群数量改善患者症状,但普拉梭菌等有益菌丰度减少不利于黏膜修复。
六、研究局限与展望
普拉梭菌研究仍面临局限。株间功能差异显著,谱系群Ⅰ与Ⅱ在代谢和免疫作用方面尚未完全解析。现有测序方法灵敏度不足,尤其在谱系群检测中存在偏差。多数研究为观察性研究,须进一步实验验证普拉梭菌在IBD中作用机制。
未来研究需进行大规模随机对照试验,验证饮食、益生元、益生菌和FMT对普拉梭菌丰度及IBD的影响。并通过多组学技术进一步解析谱系群功能差异,探索其在肠易激综合征、神经退行性疾病等跨疾病队列的广泛应用。
七、总结
普拉梭菌在IBD病中扮演着关键的调节角色,其丰度显著下降与免疫失衡和肠道炎症加剧密切相关。普拉梭菌的抗炎作用主要通过丁酸、L-鸟氨酸等代谢产物调节肠道免疫反应,维持肠屏障功能。丰度减少的原因包括肠道氧浓度升高、胆汁酸代谢失衡以及噬菌体感染等因素。作为潜在的生物标志物,普拉梭菌的丰度变化可以用于IBD的诊断和疾病活动度监测,其谱系群Ⅱ在CD中的特异性下降,提示谱系群差异可作为个性化诊疗的依据。此外,普拉梭菌作为治疗靶点,通过饮食干预、益生元、益生菌和肠道菌群移植等方式调控丰度,有望成为IBD的新治疗策略。未来的研究应聚焦于普拉梭菌与宿主及其他微生物的分子互作机制,优化FMT干预策略,并探索其在其他肠道相关疾病中的应用潜力。
利益冲突 所有作者均声明不存在利益冲突
参考文献略
引用本文:余伦天,赵笛,王率. 普拉梭菌在炎症性肠病中的关键调节作用:从微生物特性到治疗干预[J]. 中华炎性肠病杂志(中英文),2026,10(01):89-94.
转自:中华炎性肠病杂志
欢迎投稿!
tougao@medvoices.cn
稿件类型:研究速递,综述译稿,指南/共识,病例分享。